Translate

A következő címkéjű bejegyzések mutatása: biogeográfia. Összes bejegyzés megjelenítése

2016. április 16., szombat

Kúszó szentperje - a hazai flóra egy félreismert faja?

A kúszó szentperje (Hierochloë repens (Host) Beauv., syn. Anthoxanthum repens (Host) Veldkamp) egy évelő, tarackos fűfaj. Bugavirágzatai kb. 40-70 cm magasságig nyúlnak. Az egész virágzat jellegzetesen fénylő sárgásbarna, viszonylag tömött, kb. 100-200 füzérke alkotja. A füzérkék 2-3 virágúak, a pelyvák nem hosszabbak a külső toklásznál, amelynek csúcsán legfeljebb 0.5 mm hosszú szálka található, vagy a szálka hiányzik. A levelek szürkések, 5-10 mm szélesek, kopaszak. A legfelső szárlevél legalább 20 mm hosszú.

A Hierochloë repens virágzata...

... ismét...

... felső szárlevele ...

... és füzérkéi

A növény sűrű, monodomináns állományokat képez, amelyek vegetatív állapotban hasonlítanak a Calamagrostis epigejos vagy a Bromus inermis tömegéhez, de tavaszi (március-április) virágzásakor igen jellegzetes a szürke levelek tömegéből felemelkedő aranyló bugák alkotta telep.


Terméses állománya tavasszal

A H. repens a néhány bizonytalan helyzetű taxont tartalmazó Hierochloë odorata fajcsoport tagja, azon belül viszont egy aránylag jól elváló faj (Wallnöfer 2007). A korábbi hazai irodalmak a H. odorata nevet alkalmazták a hazai állományokra (alkalmanként subsp. pannonica néven alfajként megkülönböztetve). Valójában az "igazi" H. odorata (vagyis H. odorata subsp. odorata) virágzata lazább, kevesebb füzérke alkotja, levélszíne zöldebb, pelyvái hosszabbak a külső toklásznál, amelyek szálkái hosszabbak 0.5 mm-nél (Penksza & Ruprecht 2002). Ez a faj cirkumpoláris elterjedésű, és főként a tajga zóna erdőszélein, irtásain, üde gyepeiben, mocsaras-lápos termőhelyein, útszélein fordul elő, Magyarországon valószínűleg nem él. Ezzel szemben a H. repens az eurázsiai sztyeppzóna homokterületeihez kötődik, elterjedésének nyugati határát a Morva-medencében éri el. Jellemző élőhelyei az erdőszéli, záródó növényzetű, száraz, gyakran jellegtelen fajösszetételű gyepek, erdei nyiladékok. Jellemzően bolygatott élőhelyeken fordul elő, ahol tömeges fellépésével invazív, vagy legalábbis erélyes kompetítor fajokra (pl. siskanádtippan) emlékeztetően viselkedik, egy lengyel cikk (Gęsiński & Ratyńska 2011) például potenciális özönfajként ír róla. A lakóhelyem (Veresegyház) környékén meglehetősen gyakori: ritkás faültetvények alatt, parlagokon, mezsgyéken sokfelé látni állományait, az M3 autópályán Szada és Mogyoród környékén járműből is észrevehető virágzáskor. Tatán egy legelőket elválasztó mezsgyén, illetve a Kiskunságban egy ritkás faültetvényben láttam. Országos szinten egyáltalán nem nevezhető gyakorinak. A Flóraatlaszban az adatok többsége a Kisalföld, a Gödöllői-dombvidék, a Pesti-síkság, a Tengelici-homokvidék, a Dorogi-medence, a Hernád és a Sajó völgye, valamint a Taktaköz térségekből való - ezek mindegyike homok alapkőzetű, alföldperemi vagy alacsony dombsági terület.
Vigyázat, spekuláció következik! A fentiek alapján úgy tűnik számomra, hogy a H. repens az erdőssztyepp övhöz, a homok alapkőzethez és az "átmenetileg fátlan" élőhelyeket kötődik. Az átmenetileg fátlan élőhelyek alatt azokat értem, amelyek képesek lennének ugyan fás növényzet fenntartására a talajadottságok és a vízellátottság szempontjából, de a környezeti háttértényezők, növényevők vagy valamilyen egyéb bolygatás miatt az mégsem alakult ki (még). Ilyenek például egy természetes erdőben időről időre kidőlő idős fák helyén keletkező "lékek", a legelő vadak által "fenntartott" gyepek, de ide érthetjük az emberi tevékenységek miatt fátlan élőhelyeket is. Érdekes, hogy az igazán száraz, nyílt gyepekben nem igazán fordul elő a faj. Ahol mégis nyíltabb gyepben (Festuca vaginata és Euphorbia seguieriana fajokkal együtt) fordul elő, ott pusztuló fenyőültetvény alatt, főleg adventív fajokkal cserjésedő gyepekről van szó. Természetközeli állapotú, szárazsága és tápanyagszegénysége miatt fátlan nyílt homokpusztagyepekben nem láttam még, emiatt gondolom, hogy nem az "elsődleges" gyepek faja nálunk. Ha esetleg az Olvasónak van tapasztalata a fajjal, örülnék, ha megosztaná velem.

Virágzó állománya egy szemétlerakó és egy akácos szomszédságában...
... és egy valószínűleg parlageredetű homoki gyepen, jellegtelen faültetvény tisztásán
Különös módon a korábbi hazai irodalmakban a faj "szigorúan" homoki jellege egyáltalán nem tükröződik, ehelyett gyakorlatilag az összes szerző (pl. Soó & Jávorka 1951, Soó 1973, Simon 2000, Király 2009) említ középhegységi előfordulásokat, valamint leggyakrabban üde gyepeket, erdőszegélyeket és száraz erdőket jelöl meg élőhelyéül. A hazai üde gyepek felvételezése során sehol nem találkoztam a fajjal. Erős a gyanúm, hogy arról van szó, hogy a ma már H. repens néven külön fajként kezelt növény előfordulásáról írtakat a H. odorata külföldi irodalmaiból vették át: a korábbi szerzők bizonyára a H. odorata előfordulási és élőhelyválasztási adatait általánosították a nálunk is előforduló, vele (tévesen) azonosnak vélt növényre, majd ezt az egymásra épülő művek kritika nélkül átvették.

forrás: grasstalk.wordpress.com
A H. repensről nem találtam olyan kultúrtörténeti feljegyzéseket, mint a H. odoratáról, de feltehető, hogy ebből a szempontból a két fajt nem különböztetik meg. Az illatos és a kúszó szentperje virágzata is édeskés illatú, ami magas kumarintartalmának köszönhető. Európában az illatos szentperjét vallásos szertartásokon elégették, illatos füstölőként használták, innen ered a neve. A kereszténységben Szűz Máriának ajánlott növényként használták liturgikus célokra, erre utal a nemzetség német neve: Mariengras, vagyis "máriafű". Észak-amerikai indiánok a földanya hajának tartják, és a belőle készített fonatoknak gyógyító, békét és szeretetet elősegítő erőt tulajdonítanak. A gyógyászatban kumarintartalom miatt véralvadásgátló gyógyszerek készítésére is használják. Nem utolsó sorban megemlítendő, hogy a H. odorata adja a közép-európai töményitalok (szerintem) egyik legjobbika, a lengyel Żubrówka sajátos zamatát - megízlelése botanikusoknak "kötelező"!

forrás: Wikipédia

2016. február 26., péntek

Gondolatok a nemrég megjelent Flóraatlasz kapcsán

Az idei Flóra Konferencián került bemutatásra a "Flóraatlasz", vagyis Magyarország edényes növényfajainak elterjedési atlasza (Atlas Florae Hungariae). A könyvet a Nyugat-magyarországi Egyetem adta ki, s számos szerkesztő, területi koordinátor és terepi adatgyűjtő sokéves munkája kellett ahhoz, hogy végre kezünkbe vehessük. Az atlasz 2832 db megközelítőleg 6,25km * 5,55km oldalhosszú négyzetből álló hálórendszeren ábrázolja a hazai edényes növényfajok (ha jól számoltam, 2231 taxon) előfordulásait. Az adatok saját terepi felvételezésekből, 1990 utáni, pontosan lokalizálható irodalmi forrásokból, valamint herbáriumi gyűjtésekből származnak. A Flóraatlasz megjelenésével a hazai botanikus szakma régóta dédelgetett álma látszik teljesülni. Ezúton is gratulálok az Atlasz szerkesztőinek és adatgyűjtőinek!

Bartha D., Király G., Schmidt D., Tiborcz V., Barina Z., Csiky J., Jakab G., Lesku B., Schmotzer A., Vidéki R., Vojtkó A., Zólyomi Sz. (szerk. / eds.): Magyarország edényes növényfajainak elterjedési atlasza / Distribution atlas of vascular plants of Hungary. - Nyugat-magyarországi Egyetem Kiadó / University of West Hungary Press, Sopron, 329 pp.


Bár az Atlasz "száraz" információtömege elsőre talán riasztóan hathat, a hazai flóra iránt érdeklődők számára már-már a perverzió határát súrolóan izgalmas böngészni a fajok elterjedési térképei közt. Öröm látni, hogy egyes fajoknál mennyire szépen visszaigazolódik az az area, amit tulajdonképpen eddig is sejtettünk vagy tudtunk (pl. ahogyan az erdőalkotó fafajok eltérő klimatikus/edafikus niche-ei kirajzolódnak, vagy ahogyan vikariáns fajok "leváltják" egymást), máshol a meglepetés erejével hat az elterjedési mintázat szabályossága olyan gyakori fajoknál, amelyekre már egy átlagos botanikus sem fordít elég figyelmet (engem például meghökkentett, hogy a Kiskunság homokterületein hiányzik, illetve szórványszerűen van csak jelen az erdei és a héjakút-mácsonya, és az, hogy a homoki pimpó képes szinte teljesen hiányozni a Nagykunságban).
A puszta gyönyörködésen kívül azonban egy ilyen atlasz, illetve az előfordulások adatbázisa, hatalmas eszköz lehet a botanikai és ökológiai kutatások számára. A kérdés, hogy hogyan?


1. Nyilvánvaló, hogy hatalmas lökést fog adni az Atlasz a hazai florisztikai kutatásoknak. Már csak azért is, mert - mi tagadás - az adatbázis jelenlegi állapotában meglehetősen hiányos. A Szerkesztők az atlas.florae.hungariae@emk.nyme.hu címen várják a kiegészítéseket, valamint a Studia botanica hungarica és a Kitaibelia folyóiratok szerkesztői is jelezték, hogy az Atlasz adatbázisát kiegészítendő és folyamatosan frissítendő új rovatot indítanak florisztikai adatközlések részére. A Studia botanicában már meg is jelent egy ilyen cikk. Mindkét kezdeményezésnek kifejezetten örülök, ugyanis én elsődlegesen nem folytatok florisztikai kutatást, néha azonban mégis rábukkanok egy-egy regionálisan új előfordulásra, amit megérné lepublikálni, viszont általában nem tudok elég időt szánni egy igényesebb, "kerekebb" florisztikai cikk megírására, így végül az adat marad a "fiókban". A fenti lehetőségekkel az érdekes előfordulási adatok lepublikálása könnyebb lesz, s remélem, ez rajtam kívül másokat is arra indít, hogy adataikat közzétegyék.

Mea culpa - a Müller-nőszőfű egy tájegységre új adatával máig adós vagyok...

2. A megbízható adatokkal rendelkező fajok esetén, illetve az adatminőség javítása után az Atlasz alkalmas lesz makroökológiai mintázatok vizsgálatára. A "modellező biogeográfia" manapság az ökológia frontvonalába tartozó irányzat, nívós folyóiratokban jelennek meg olyan cikkek, amelyek gridalapú adatbázisok (atlaszok, flóraművek, faunalisták) alapján komoly statisztikai módszertannal boncolgatnak olyan kérdéseket, mint pl. hogyan változik a fajgazdagság földrajzi és környezeti grádiensek mentén, hogyan jósolható meg egyes fajok vagy közösségek előfordulása, klímaváltozásra adott válasza. Magyarországról egyelőre nem sok efféle vizsgálatot olvashattunk, s ennek egyik oka minden bizonnyal az adathiány. Talán a Flóraatlasz megjelenésével nálunk is többen kezdenek majd modern biogeográfiai kutatásokba. Lássunk néhány példát, milyen kérdésekkel lenne érdemes foglalkozni:

- Milyen a fajgazdagság térbeli mintázata Magyarországon? Milyen klimatikus, tájtörténeti, geológiai és felszín-morfológiai változókkal magyarázható a térségek eltérő fajgazdagsága? Ugyanezt a kérdést megvizsgálhatjuk fajcsoportonként: csak adventív fajokra, csak szubmediterrán flóraelemekre, csak fásszárúakra...

- Alátámaszthatóak-e statisztikai módszerekkel az ország növényföldrajzi mintázatainak leírására tett korábbi kísérletek, pl. a növényföldrajzi régiók lehatárolása, a közép-dunai flóraválasztó, a kontinentális-szubmediterrán-kárpáti hatás alatt álló régiók átmenetei vagy határai.


3. A Flóraatlaszból megkaphatunk olyan flóralistákat, amelyek egy-egy tágabb térség regionális fajkészletét jelentik. Ezek azok a fajok, amelyek a lokális közösségekben ("növénytársulásokban") megjelenhetnek. Pl. hiába lenne alkalmas élőhely egy néhány hektáros nedves talajú legelő a héjakút-mácsonyának a Kiskunság közepén, ha valamilyen okból a környéken nem fordul elő, így nincs honnan betelepüljön, s végül nem fog megjelenni az adott foltban. A Flóraatlasz ilyen módon értékes referenciát szolgáltathat az Atlaszénál finomabb térléptékű növényzeti mintázatok kutatása számára, segíthet megérteni, a lokális közösségek szerveződésének törvényszerűségeit. A regionális fajkészlet és a lokális közösségek szerveződése közti kapcsolat szintén egy divatos, gyorsan fejlődő irányzata az ökológiának - a hazai vizsgálatok azonban itt is ritkák.


A Flóraatlasz megjelenése és folyamatos frissítése tehát a klasszikus florisztikai kutatások mellett több olyan irányzat számára is megtermékenyítően hathat, amelyeknek eddig kevés figyelmet szenteltek a hazai ökológusok, az adathiánynak is köszönhetően. Remélem, hogy a Flóraatlasz és a modern adatelemző módszertan együttesen hozzájárul az ország biogeográfiai és közösségi ökológiai sajátosságainak megismeréséhez.

2015. április 18., szombat

A 'distance decay' jelenség a közösségi ökológiában I.

Akik magyar nyelven próbálnak korszerű, természettudományos ismereteket közzétenni, könnyen találkozhatnak azzal a nehézséggel, hogy egy idegen, rendszerint angol nyelvű, nemzetközi szakirodalomban közismert szakkifejezés nehezen ültethető át magyar nyelvre a kifejezés jelentéstartalmának, frappánsságának és használhatóságának megőrzésével, bármennyire egyszerű jelentéssel bírjon is. Éppen ez a helyzet a 'distance decay' nevű fogalommal.

A blogom nyilvánosságát megragadva javaslatokat várok arra, hogy milyen magyar nevet lehetne adni ennek a jelenségnek. Az angolban 'distance' = távolság, 'decay' =hanyatlás, rothadás. A javaslatokat hozzászólásként vagy a jobb oldali menüben a kapcsolatfelvételi űrlapon várom.

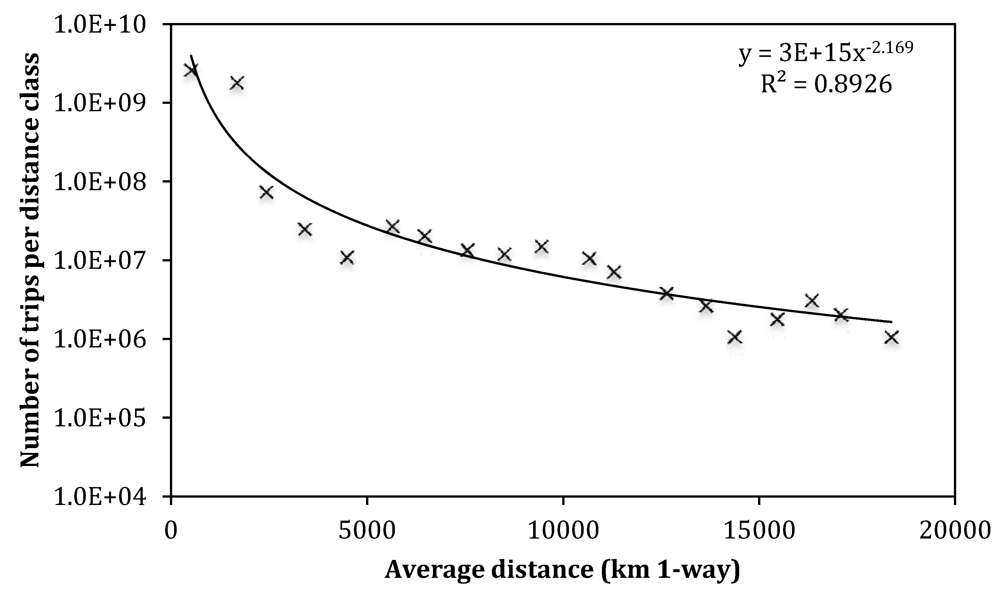
A 'distance decay' (mostantól DD-nek rövidítem - ha már nem magyar a szó, legalább legyen rövid) egy földrajzi kifejezés, amely egy teljesen triviális megfigyelésben gyökerezik, amit Tobler (1970) után a geográfia első törvényének is hívnak: "minden mindennel kapcsolatban áll, de az egymáshoz közeli dolgok erősebben, mint a távoliak". Ez tulajdonképpen a térbeli autokorreláció definíciója. Nem tudom, van-e olyan földrajzi térbeli mintázat, amire ne lehetne találni olyan térbeli és időbeli vizsgálati léptéket, amelyben a fenti kijelentés teljesül - szerintem nincs. A jelenséget a fizikában tulajdonképpen az általános tömegvonzás törvénye írta le elsőként, s a gravitációs modellek más tudományterületeken is analógiaként szolgáltak a távolság függvényében gyengülő interakciók leírására. Éppen így definiálhatnánk a DD-t: a növekvő távolsággal gyengülő interakció közti függvénykapcsolat. A DD jelenséget általánossága miatt az élet legkülönbözőbb területein sikerült felismerni. DD-t mutat például az utazások gyakorisága az út hosszának (vagyis az úticél távolságának) függvényében, a koraszülöttek életben maradási valószínűsége a legközelebbi egészségügyi ellátóhelytől való távolság függvényében és a kereskedelmi kapcsolatok erőssége a földrajzi távolság függvényében.

Utazások száma adott távolságú célpontra
forrás: Peeters & Landré, Sustainability 2012, http://www.mdpi.com/2071-1050/4/1/42/htm
Különböző bolttípusok vásárlóinak száma a lakóhelyük távolsága szerint
forrás: http://lewishistoricalsociety.com/wiki2011/tiki-read_article.php?articleId=9


A térbeli autokorreláció ökológiai mintázatokban játszott fontos szerepét a XX. század utolsó évtizedeiben fogalmazták meg (Legendre & Fortin 1989, Legendre 1993), noha implicit módon már jóval korábban felismerték (pl. MacArthur & Wilson 1967). A közösségi ökológia terén pedig Nekola és White (1999) cikkéhez köthetjük a DD leírását, amely szerint a közösségek (most: adott területen előforduló fajok összessége) közti hasonlóság csökken a köztük lévő távolság növekedésével.

Egy jellemző distance decay ábra a közösségi ökológia területéről: az x-tengelyen a közösségek földrajzi távolságai, az y-tengelyen a közösségek hasonlóságai, a pontok az összehasonlított közösségpárokat jelölik
forrás: Dexter et al., PNAS 2012, http://www.pnas.org/content/109/20/7787/F1.expansion.html

A tapasztalat általában megerősíti azt a megfigyelést, hogy egy adott közösségtől minél messzebbre megyünk, átlagosan annál kevésbé várható, hogy hasonló fajösszetételű közösséget találjunk. Az azonban nagyon gyakran nem egyértelmű, hogy a hasonlóság csökkenésének mi az oka, illetve a különböző lehetséges okok milyen mértében járulnak ehhez hozzá. Amit tudunk, hogy a közösségek térbeli mintázata levezethető az egyes fajokéból (Morlon et al. 2008, Nekola & McGill 2014).

DD jelenség magyarázatához két modell lehet segítségünkre: a (1) niche-modell és a (2) korlátozott terjedési modell. A niche-modellben azt feltételezzük, hogy a vizsgált tájat különböző adottságú foltok alkotják, a foltok valamilyen léptékben térben aggregáltak (vagyis a környezetnek van térbeli autokorrelációja), a fajok élőhelyigényükben különböznek, valamint bármely nekik megfelelő élőhelyfoltban előfordulhatnak, terjedésüket egyedül az élőhely alkalmatlan mivolta korlátozhatja. Ebben az esetben tehát a közösség DD-je egy "külső" tényező, a környezeti DD lenyomata. A korlátozott terjedési modellben ezzel szemben azt feltételezzük, hogy a táj homogén a fajok megtelepedése szempontjából, a fajok élőhelyigénye nem különbözik, viszont terjedésük időben és térben korlátozott: új megtelepedések a régi megtelepedések közelében várhatóak, a teljes területen való elterjedéshez pedig hosszú időre van szükség. Eszerint a DD egy "belső" tényezőnek, a fajok korlátozott terjedőképességének köszönhető.
A valóságban rendszerint mindkét mechanizmus, tehát a niche-folyamatok és a korlátozott terjedés is felelős a tapasztalt összefüggés kialakulásáért. A DD jelenség tehát az alábbi tényezőkből vezethető le:
- a vizsgált területen a környezet heterogenitása, vagyis a területen az élőhelyfoltok különbözőségének mértéke: ez szabja meg, hogy az egyes fajok mennyi megtelepedésre alkalmas foltot találnak a területen, hiszen ha egy területen nagyon különböző élőhelyfoltok vannak, akkor azokon nagyon különböző élőhelyigényű fajok tudnak előfordulni, viszont minden élőhelyen talán egyik faj sem fordul elő.
- a vizsgált terület tájstruktúrája, vagyis az élőhelyfoltok térbeli mintázata: ezt fogja tükrözni a közösségek térbeli mintázata, amennyiben a terjedés azt lehetővé teszi.
- a fajok niche-szélessége, vagyis az, hogy mennyire ragaszkodnak egy bizonyos élőhelytípushoz (mennyire generalisták vagy specialisták): a generalista fajok többféle élőhelyen is előfordulnak, így a térbeli mintázatukat nem annyira az élőhelyfoltok térbeli struktúrája, hanem a terjedési potenciáljuk határozza meg. A specialista fajok egy adott élőhelytípushoz ragaszkodnak, és jó terjedőképesség esetén pontosan követik annak foltosságát.
- a fajok terjedőképessége: minél jobban terjed egy faj, annál inkább a megfelelő élőhelyek térbeli mintázatát követi, míg a rosszul terjedő fajok nem jutnak el minden potenciálisan megfelelő foltba, vagy nem maradnak fenn ott hosszú távon. (Pl. egy hím madárnak nem elég eljutni egy élőhelyre a faj tartós megtelepedéséhez, mert ehhez kell egy tojó is...)
A DD-re ható tényezőkkel Nekola & White (1999) és Soininen et al. (2007) is foglalkoznak, mindkét cikkben megfogalmaznak általánosságokat arról, hogy mely tényezők eredményeznek "meredek", "erős", csökkenést a hasonlóságban, vagy nagyfokú térbeli strukturáltságot. Később bemutatom, hogy a DD milyen sokféle mérőszámmal írható le, amelyek mind a csökkenés mértékének kifejezésére szolgálnak, de valójában nem egészen ugyanazt fejezik ki, és nem is függetlenek egymástól. Emiatt igyekszem óvatosan fogalmazni azzal kapcsolatban, hogy egyes tényezők hogyan hatnak a várható DD-re.

A változatos domborzatú, magashegységi tájban a közösségek hasonlósága kis távolságon belül is hirtelen lecsökkenhet

A niche-modell reális magyarázatot nyújt a DD-re, ha:
- a környezeti (a fajok szempontjából) heterogén, vagyis a fajok specialisták,
- a környezeti háttérváltozók térben autokorreláltak,
- a fajok jól (csaknem korlátlanul) terjednek.

A korlátozott terjedési modell ad jó magyarázatot, ha:
- a környezet (a fajok szempontjából) homogén, vagyis a fajok generalisták,
- a háttérváltozók nem autokorreláltak (ez részben a homogenitásból is fakadhat),
- a fajok rosszul terjednek.

Nincs jelentős DD, ha:
- a környezet (a fajok szempontjából) homogén vagy heterogén, de akkor a változók a vizsgált léptékben nem autokorreláltak,
- a fajok jól terjednek.

A kis holdruta (Botrychium lunaria) jól terjedő, de specialista faj


Hogy konkrét esetekben a fenti szempontok hogyan teljesülnek, az az adott vizsgálat módszertani döntéseitől is függ, mindenek előtt a mintavételi egységek méretétől és a mintavételezett terület nagyságától. Ugyanaz a vizsgálati objektum teljesen más DD-t mutathat, ha eltérő térléptékben vizsgáljuk. Pl. ha Magyarország növényzetét vizsgáljuk, más térbeli mintázatok tűnnek fel, ha a mintavételi egységeink 1 m2-esek és ha 1 km2-esek. Általánosságban igaz, hogy minél nagyobb a mintavételi egység és a mintavételezett terület, annál valószínűbb, hogy erős DD összefüggést kapunk.

Ennyi elmélet után jogosan merül fel a kérdés: mire jó ez az egész? A válasz(om): az, hogy valamilyen élő közösség, pl. egy terület növényzete, milyen térbeli változatossággal (béta diverzitással) rendelkezik, alapvető kérdés a természetet leíró, ökológiai kutatásokban. Az erről szerzett ismeretek pedig fontosak lehetnek természetvédelmi értékek minősítése, veszélyek felmérése, területek védelme szempontjából. Például ha egy területről kimutattuk, hogy a rajta élő fajok terjedőképessége alacsony, akkor a természetvédelmi kezeléseknek kiemelt figyelmet kell fordítaniuk arra, hogy a fajok potenciális élőhelyei között ökológiai folyosókat tartsanak fenn, valamint fokozottan kell ügyelniük a lokális kihalások elkerülésére. A béta diverzitás térbeli elemzése szintén hozzásegít olyan alapvető biológiai folyamatok megértéséhez, mint a fajképződés, a klímaváltozások alkalmával történő flóra- és faunavándorlások és a biológiai inváziók. Hogy a gyakorlati célok számára is fontos információk birtokába technikailag hogyan juthatunk a DD modellek segítségével, egy későbbi bejegyzésben fogom leírni.

2014. szeptember 3., szerda

Domborzat, mikroklíma és növényzet - új cikk és ami eszembe jutott róla

Főleg szegedi kollégák alkotta szerzői gárda tagjaként megjelent egy cikkünk az Időjárás folyóiratban (IF 2013: 0.405). A cikkben szigetszerű élőhelyeken, egy bugaci homokbuckán és egy mecseki dolinán vizsgáltuk a mikroklíma (vagyis a domborzat, a talaj és a környező növényzet által kis térléptékben meghatározott klíma) és a növényzet kapcsolatát.

A változatos mikroklímájú, szigetszerű élőhelyek menedéket nyújthatnak olyan fajoknak, amelyek számára a területre egyébként jellemző makroklíma (vagyis a nagyobb kiterjedésű területre jellemző éghajlat) már nem kedvező. Ennek klímaváltozások során van nagy jelentősége, hiszen így kicsi, lokális populációkban fenn tudnak maradni kihalásra vagy elvándorlásra ítélt fajok. A változatos domborzatú hegységek kiemelkedő fajgazdagsága sokszor ennek az ún. refúgiumhatásnak köszönhető: egy napos, száraz sziklafelszíneket és hűvös, nyirkos sziklahasadékokat is tartalmazó hegyen a szárazságtűrő és a hidegtűrő fajok is egyaránt képesek megélni. S mivel ezeken az élőhelyeken a makroklíma változásait a kitettségből és az alapkőzet fizikai tulajdonságaiból adódó hatások (pl. egy sziklafal kitettségéből adódó felmelegedése, egy domboldal meredekségéből adódó vízvisszatartási képessége, a talaj vízmegtartó képessége) tartósan tompítják, a változó makroklímához képest a mikroklíma viszonylag állandónak mutatkozik. Ez pedig lehetővé teszi, hogy a "makroklímába nem illő" fajok tartósan fennmaradhassanak. A korábbi, eltérő makroklímájú időszakokból fennmaradt állományokkal rendelkező fajokat reliktumfajoknak nevezzük.

Hegyi tarsóka (Thlaspi montanum)
Hidegkori reliktum a Pilisben
Magyar gurgolya (Seseli leucospermum) 
Harmadidőszaki, melegkori reliktum-endemizmus, a Pilisben a hegyi tarsóka
állományának közvetlen közelében is él
Az élőhelyszigeteken a többi populációtól elzárva, tartós izolációban élő állományok gyakran önálló evolúciós útra lépnek és önálló fajjá fejlődnek, melyeket reliktum-endemizmusoknak nevezünk (az endemikus faj vagy endemizmus bennszülött fajt jelent). Így alakult ki például a szerbiai MÉTA-túrán látott Ramonda serbica, a Gesneriaceae család tagja. Ez a család ma jórészt a trópusokon fordul elő, azonban a harmadidőszaki felmelegedéskor őseinek elterjedése elérte Dél-Európát. Itt a Pireneusokban és a balkáni hegységekben megfelelő refúgiumokban fennmaradtak a makroklíma lehűlése (eljegesedések) után is, és önálló fajokká fejlődtek, melyeket külön nemzetségbe sorolunk: Ramonda myconi (a Pireneusokban), R. nathaliae és R. serbica (a Balkánon).

Habár a cikkben csak érintőlegesen kerülnek szóba a reliktumfajok, bízunk abban, hogy a mikroklíma, a domborzat és a növényzet közti kvantitatív összefüggések boncolgatásával hozzájárultunk a természet megértéséhez és értékeink megőrzéséhez. A publikáció itt tölthető le.